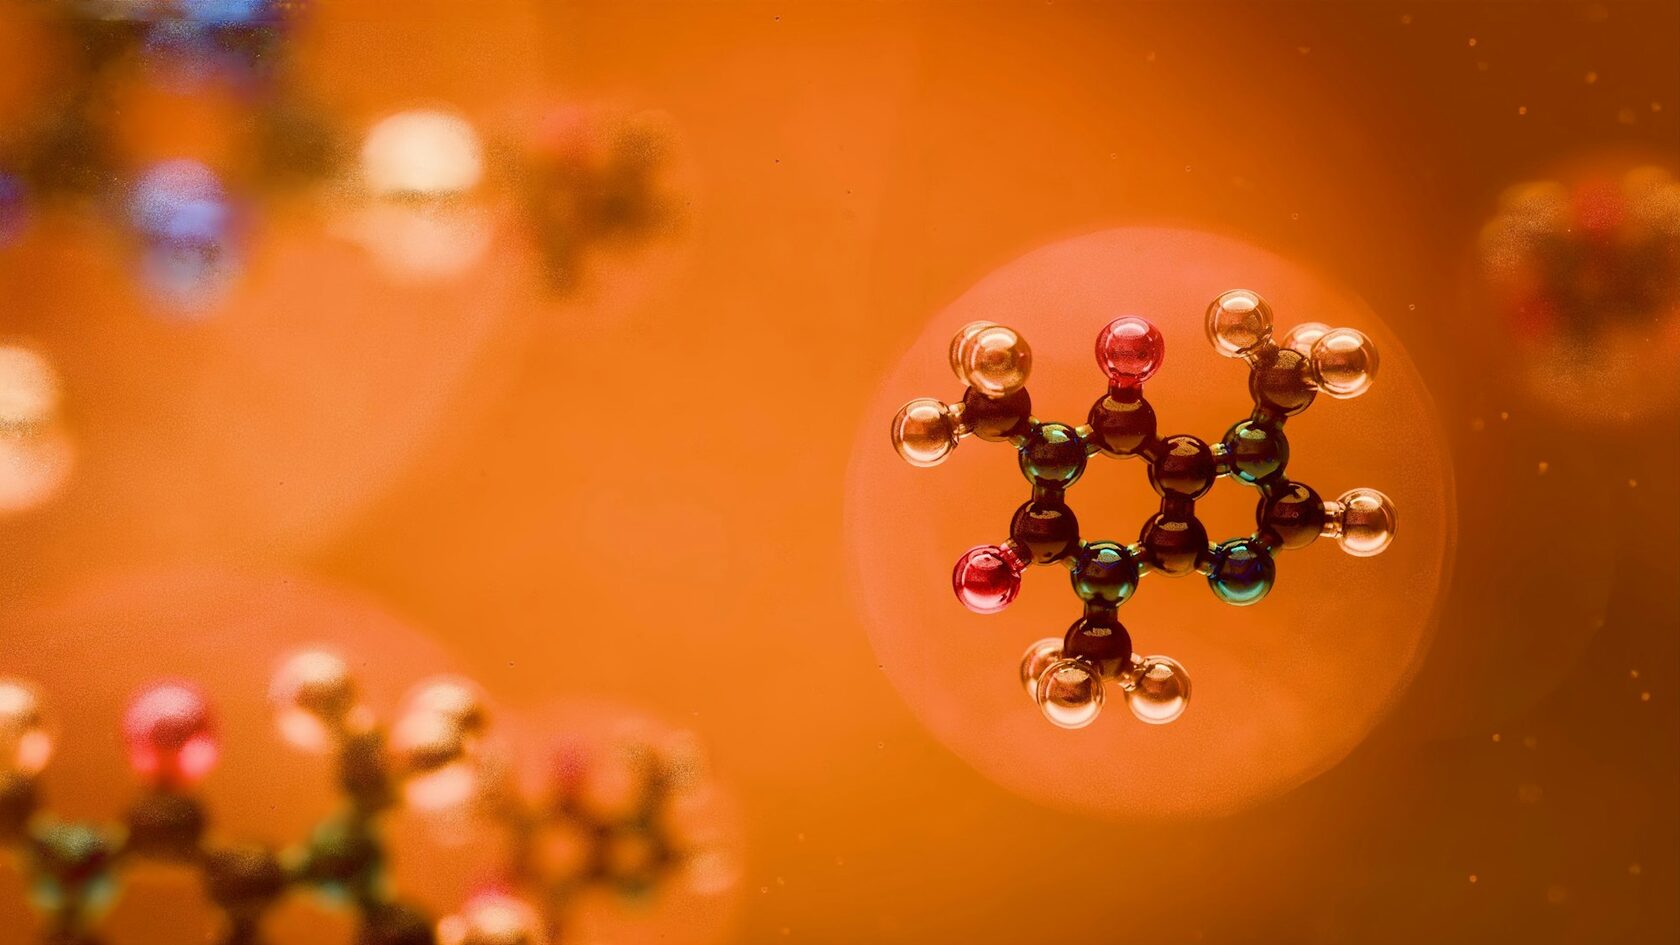Класс органических соединений

Липиды: жир, мембрана, гормон

Не полимеры, не сахара и не аминокислоты — но именно липиды формируют двойной слой клеточной мембраны, запасают энергию, защищают от перегрева и служат предшественниками гормонов. Разбираем гидрофильно-гидрофобные свойства, классификацию и четыре главных класса: триглицериды, фосфолипиды, воски и стероиды.

  • Гидрофильность и гидрофобность
  • Классификация
  • Триглицериды
  • Фосфолипиды
  • Воски
  • Стероиды

Схема — двойной слой в движении: головки и хвосты колеблются

полярные головки углеводородные хвоста
Двойной слой в водной среде: гидрофильные головки обращены к воде, гидрофобные хвоста — друг к другу. Между липидами встроен холестерол (четырёхугольные контуры).
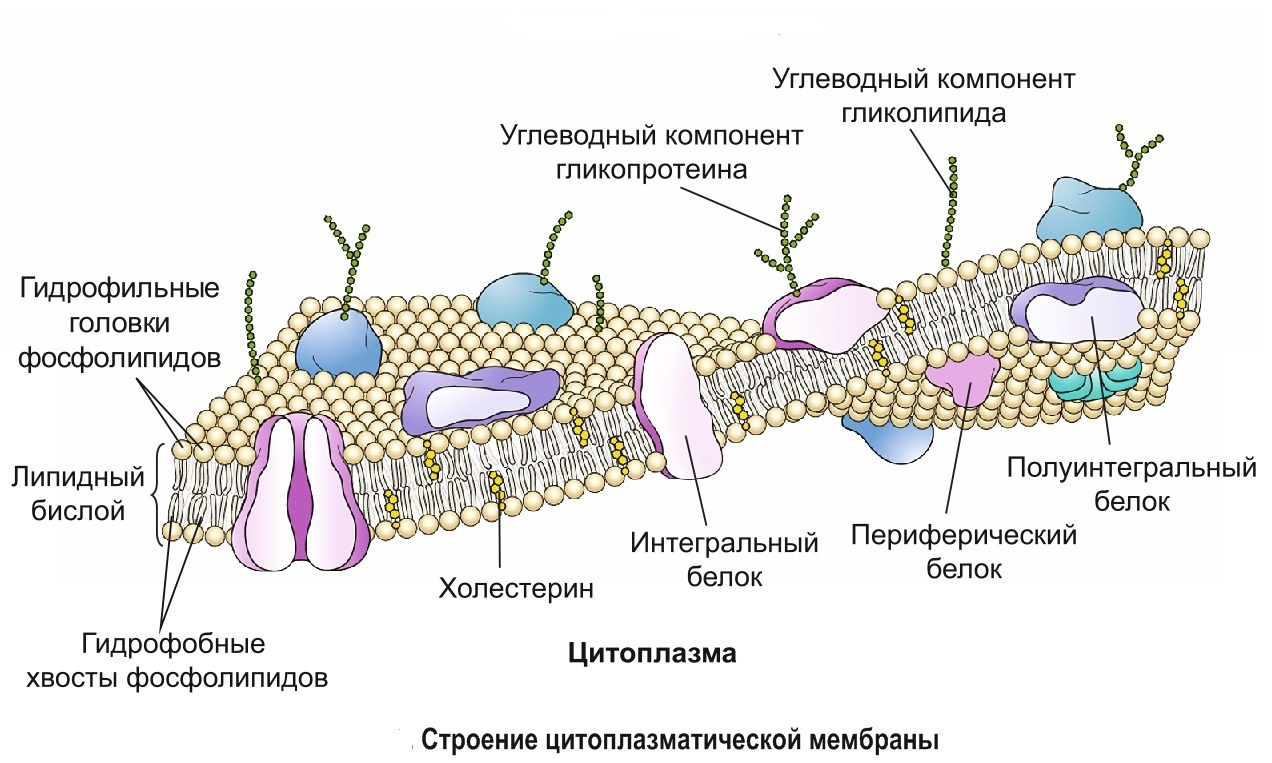
Схема строения клеточной мембраны: липидный бислой, холестерол, мембранные белки, гликопротеины и гликолипиды
Схема клеточной мембраны
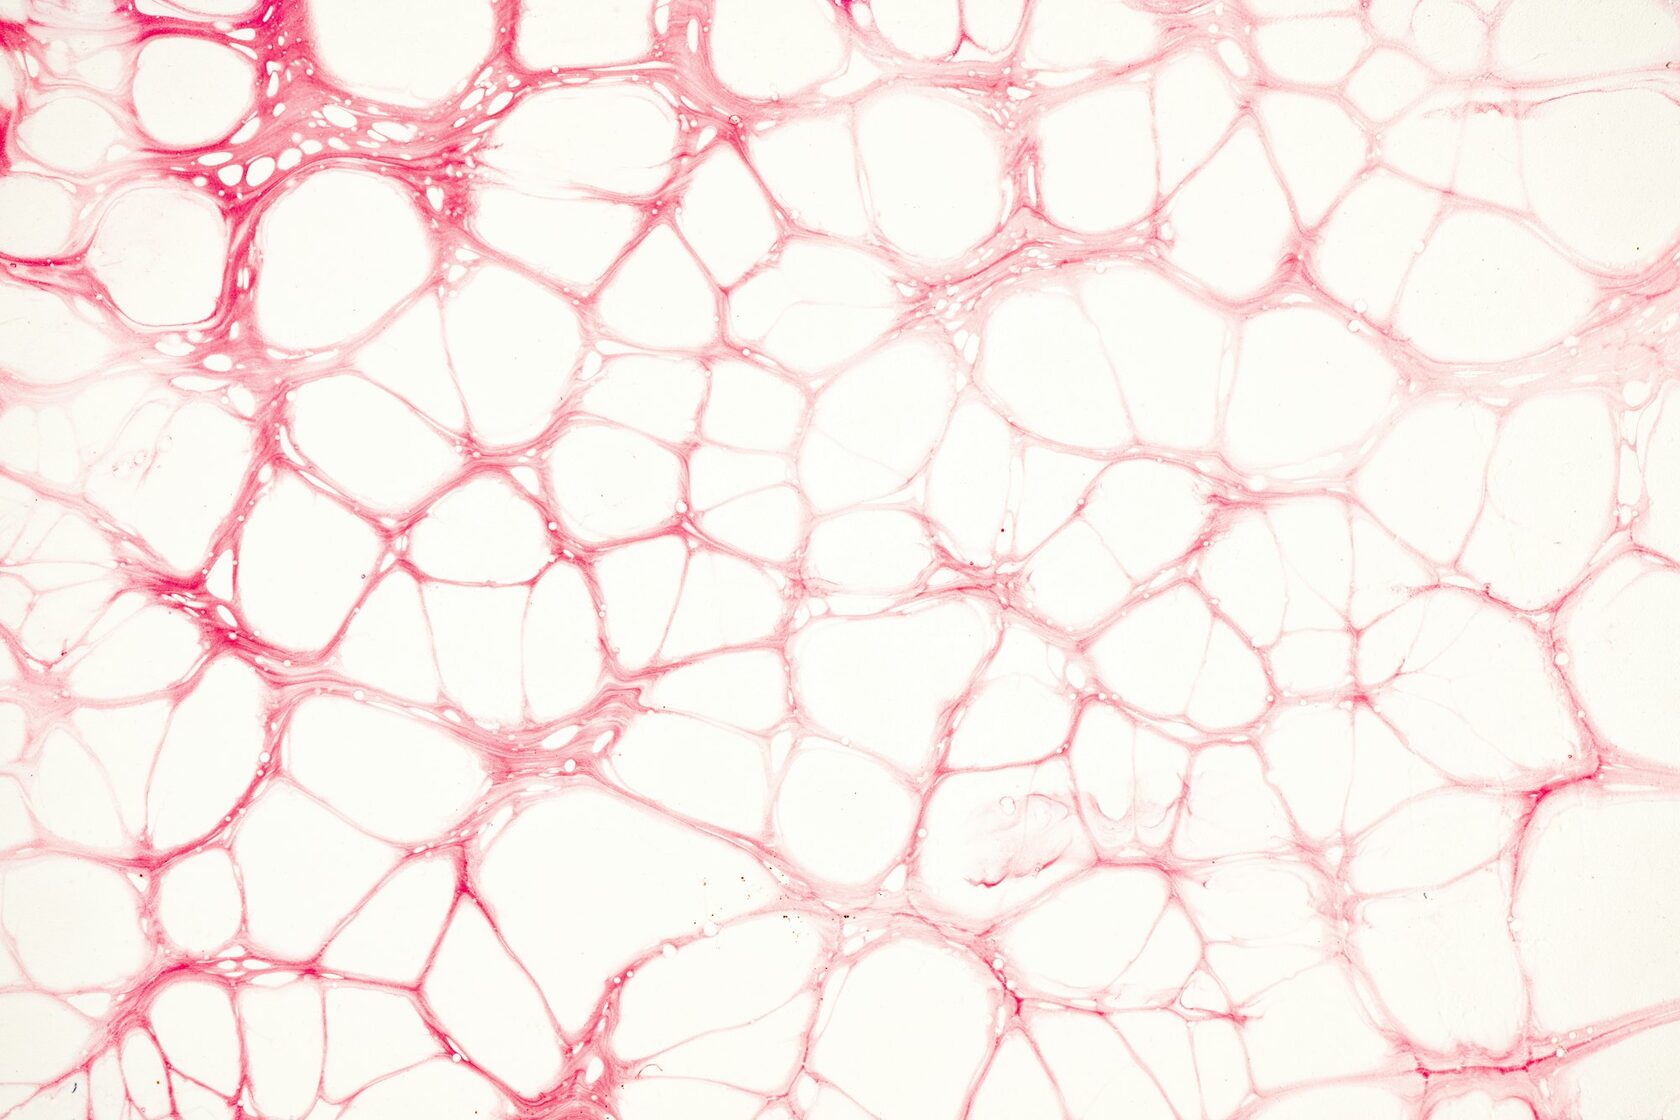
Капли триглицеридов в клетках жировой ткани
Запас жира в адипоците
Кристаллы холестерола
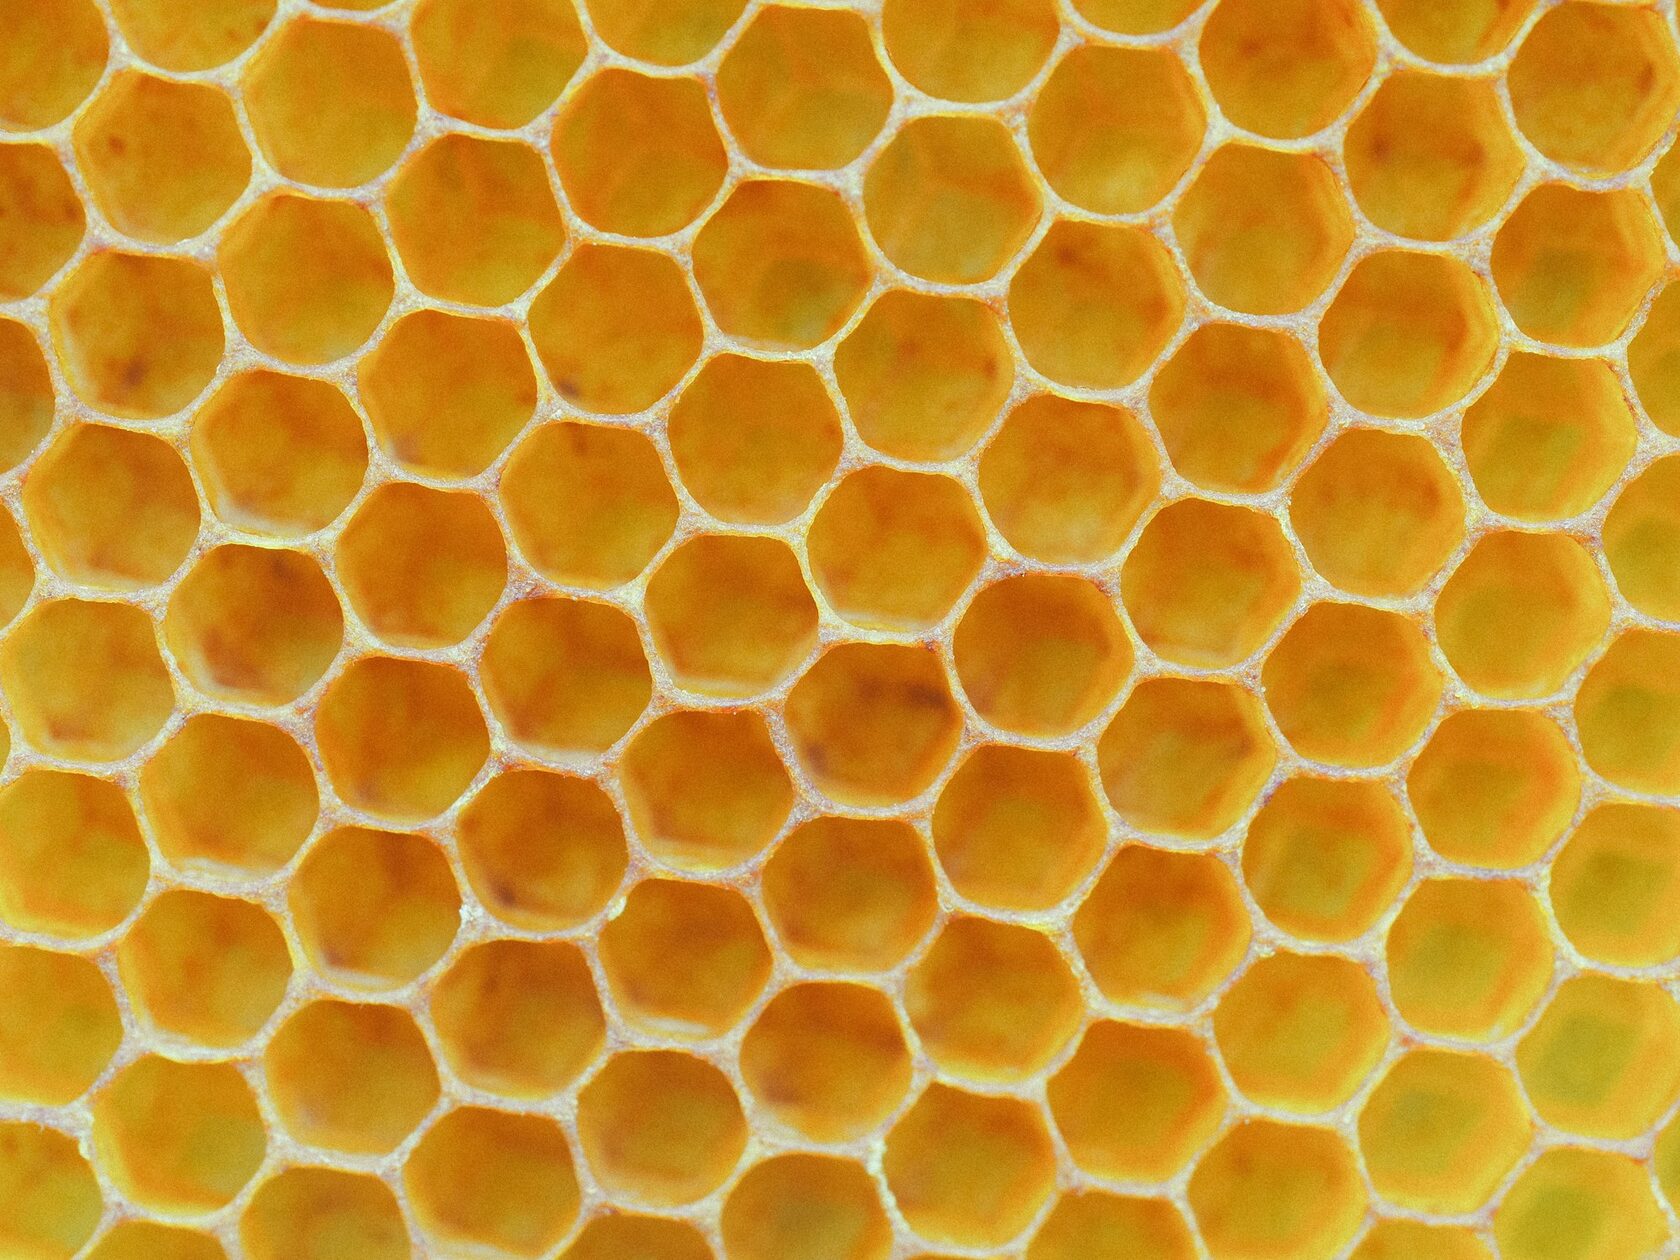
Соты из пчелиного воска
Пчелиный воск
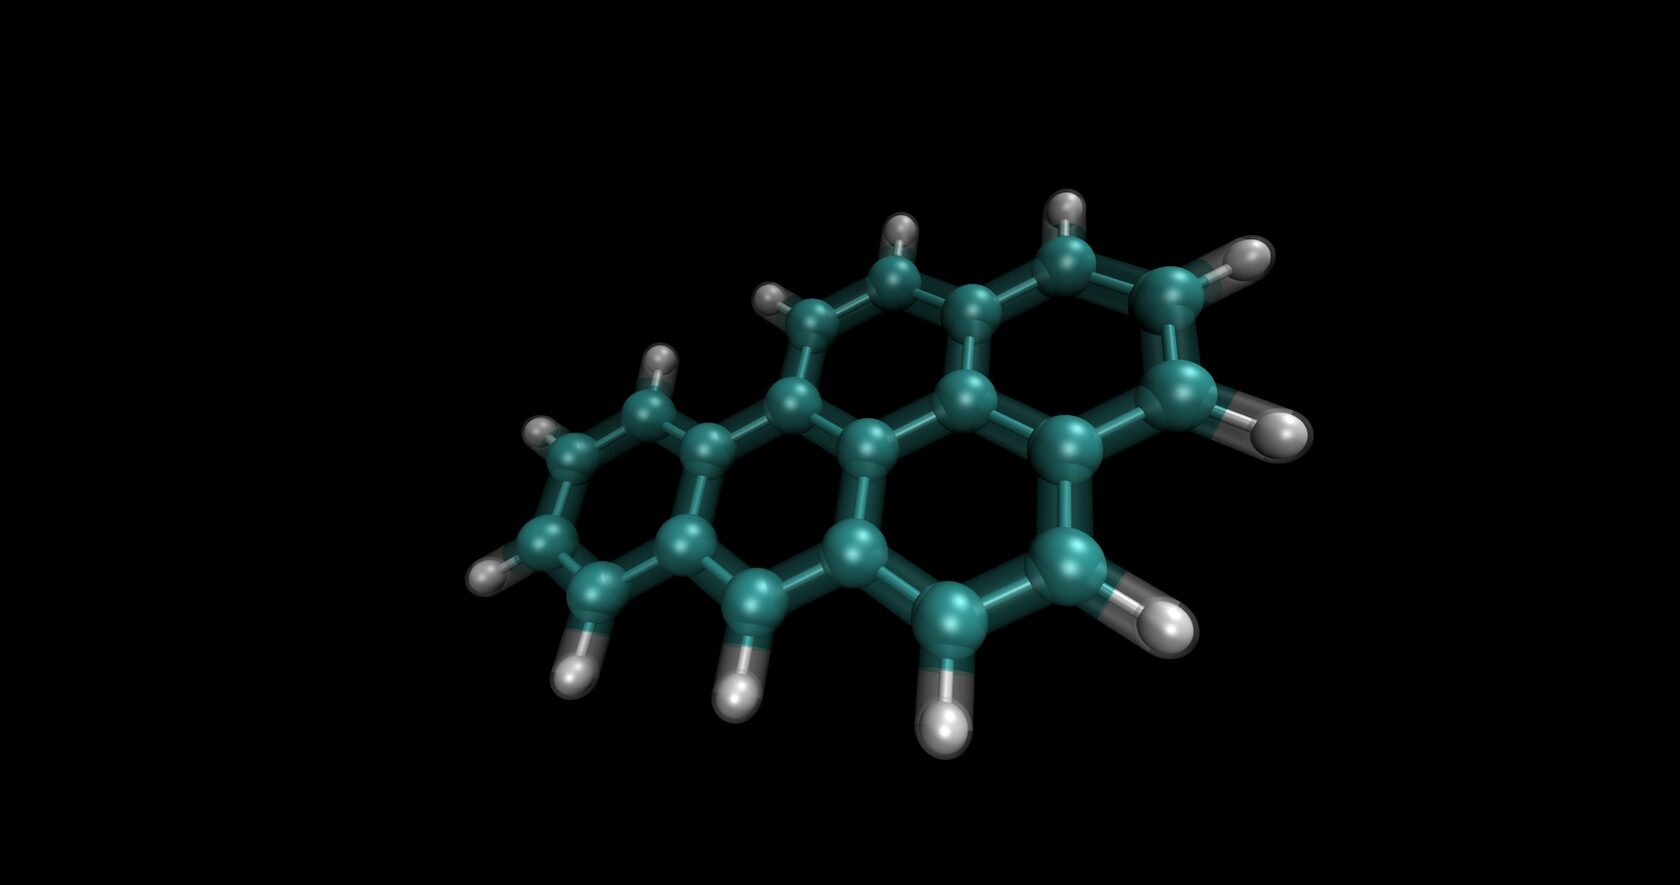
Объёмная компьютерная модель молекулы стероидного гормона с четырьмя конденсированными кольцами
Модель стероидного гормона

Содержание и переход по темам

Материал построен от общего принципа к частным классам: сначала гидрофильно-гидрофобные свойства липидов и их классификация, затем триглицериды, фосфолипиды, воски и стероиды — по одному большому классу на раздел — и в конце биологические функции липидов с разбором частых вопросов.

Все числовые значения на странице снабжены ссылками на источники: полный список работ приведён в разделе «Научная литература по теме».

Гидрофильно-гидрофобные свойства почему жир не тонет в воде

Липиды — неполярные органические соединения: их углеводородные цепи не образуют с водой водородных связей, поэтому молекулы воды не «смешиваются» с жиром. Одновременно многие липиды содержат полярные группы — карбоксильную, эфирную, фосфатную, гидроксильную. Такая двусторонняя природа называется амфипатичностью и определяет всё поведение липидов в клетке [1, 2, 5, 6].

Амфифильная молекула: две стороны одной структуры

Полярная головка взаимодействует с водой, углеводородные хвоста уходят от неё. Пунктир показывает движение хвостов — именно оно делает мембрану текучей.

полярная головка гидрофобные хвоста вода гидрофобная среда

Масло и вода: без эмульгатора и с ним

Переключайте режим: без поверхностно-активных веществ капли сливаются и всплывают; лецитин удерживает мелкие капли в виде эмульсии.

слой масла вода вода капли стабилизированы лецитином

Гидрофобность

Липиды плохо растворимы в воде: их молекулы не образуют водородных связей с водой и не ионизируются. Растворимость триглицеридов в воде настолько мала, что их называют не растворимыми, а лишь эмульгируемыми: в виде капель они рассеиваются в воде, но не смешиваются с ней [1, 3, 12].[1, 3]

Растворимость в органических растворителях

Жиры, воски, холестерол и большинство стероидов хорошо растворяются в эфире, хлороформе, бензине и ацетоне. Воски растворяются в горячем этаноле, но не в холодном. Это свойство используют в лаборатории: экстракцию липидов из тканей проводят органическими растворителями (метод Фолча — смесь хлороформа и метанола) [3, 14, 15].[3, 14, 15]

Плотность и температура плавления

Удельный вес жиров 0,90–0,93 г/см³, то есть меньше воды, поэтому капли масла всплывают, а жировые слои плавают на поверхности. Липиды не имеют резкой температуры плавления: воски размягчаются в интервале (примерно 37–65 °C), а жиры плавятся в узком температурном диапазоне, зависящем от состава [3, 14, 16].[3, 14, 16]

Амфипатичность и поверхностная активность

Молекулы с полярной головкой и неполярными хвостами снижают поверхностное натяжение на границе вода/воздух и вода/масло, поэтому работают как поверхностно-активные вещества: лецитин молока и яйца, желчные соли, мыло [2, 6, 8].[2, 6, 8]

Гидрофобный эффект

Энергетическая причина самосборки: чтобы неполярные хвосты не контактировали с водой, молекулы сворачиваются хвост к хвосту. Так образуются мицеллы и липосомы, а в клетке — двойной слой мембраны. Это не «химическая реакция», а результат стремления системы к минимуму свободной энергии [1, 2, 5].[1, 2, 5]

Гидрофильные группы в составе липидов

Полярные фрагменты, делающие липид амфипатичным: карбоксильная группа (–COOH, –COO⁻) у жирных кислот, фосфатная группа у фосфолипидов, спиртовая (–OH) у глицерола и церамидов, аминогруппа (–NH₂, –NH₃⁺) у сфинголипидов, азотистые основания — холин, этаноламин, серин, инозитол [1, 3, 6].[1, 3, 6]

Таблица 1. Растворимость представителей липидов в разных средах (обобщённые данные учебных руководств по биохимии).
Представитель Вода Эфир Хлороформ Ацетон Этанол холодный Бензин
Триглицериды − + + ± − +
Холестерол − + + + ± +
Воски − + + ± − +
Фосфолипиды − + + ± ± ±

+ — хорошо растворяется ± — ограниченно или при нагревании − — не растворяется

Классификация липидов по составу и строению

Единой классификации липидов до сих пор не существует: биохимики делят их то по элементному составу, то по биологической функции, то по способности гидролизуваться. Наиболее устойчивая схема делит липиды на простые (содержат только углерод, водород и кислород), сложные (дополнительно содержат фосфор, азот или серу) и неомыляемые — стероиды, не подвергающиеся гидролизу при кипячении со щелочью [3, 4, 14].

ЛИПИДЫ Простые только C, H и O Сложные есть P, N или S Неомыляемые гидролизу не поддаются жирные кислоты высшие спирты жиры и воски фосфолипиды гликолипиды липопротеины холестерол стероидные гормоны желчные кислоты витамин D

Простые липиды

Жирные кислоты, спирты, жиры, воски

Содержат только углерод, водород и кислород. К ним относятся свободные жирные кислоты и высшие одноатомные спирты, а также сложные эфиры этих соединений — жиры (триглицериды) и воски. Это «энергетическая» и «защитная» часть липидов [3, 4, 14].

  • Насыщенные жирные кислоты: без двойных связей (пальмитиновая, стеариновая).
  • Ненасыщенные: с одной или несколькими двойными связями (олеиновая, линолевая, арахидоновая).
  • Жиры: триацилглицериды; воски: эфиры кислот и высших спиртов.

Сложные липиды

Фосфолипиды, гликолипиды, липопротеины

Кроме углерода, водорода и кислорода содержат фосфор, азот или серу. Фосфолипиды и гликолипиды имеют полярную головку и углеводородные хвоста, поэтому амфипатичны и формируют мембраны. Липопротеины — комплексы липидов с белками-переносчиками в крови [1, 4, 6, 13].

  • Фосфолипиды: глицерофосфолипиды и сфингомиелин.
  • Гликолипиды: углеводный компонент связан с липидной частью.
  • Липопротеины: хиломикроны, ЛПНП, ЛПВНП, ЛПОНП.

Неомыляемые липиды

Стероиды и стеролы

Стероиды построены на четырёхколечном скелете и не содержат сложноэфирных связей, поэтому при кипячении со щелочью не омыляются. К ним относят холестерол, стероидные гормоны, желчные кислоты, витамин D, а также фитостеролы растений [3, 4, 7, 14].

  • Холестерол: главный стерол мембран животных клеток.
  • Гормоны: глюкокортикоиды, минералокортикоиды, половые.
  • Желчные кислоты: эмульгаторы жиров в кишечнике.
Таблица 2. Важнейшие жирные кислоты: обозначение по числу атомов углерода и двойных связей (Cn:m) и ω-положение первой двойной связи.
Жирная кислота Обозначение Двойных связей ω-семейство Значение
Пальмитиновая C16:0 0 — Насыщенная, преобладает в животных жирах [3, 14].
Стеариновая C18:0 0 — Насыщенная; входит в состав жиров молока и какао-бобов [3].
Олеиновая C18:1 1 (cis) ω-9 Главная жирная кислота оливкового масла и жира адипоцитов [3, 8].
Линолевая C18:2 2 ω-6 Эссенциальная: в организме человека не синтезируется [1, 8].
α-Линоленовая C18:3 3 ω-3 Эссенциальная; предшественник EPA и DHA [1, 8].
Арахидоновая C20:4 4 ω-6 Предшественник простагландинов, тромбоксанов и лейкотриенов [1, 9].

Триглицериды жиры и масла

Триглицерид (триацилглицерид, ТАГ) — сложный эфир глицерола и трёх жирных кислот, самый распространённый липид живых организмов и главный компонент пищевых жиров. В клетке он запасает энергию: 1 г триглицерида даёт около 9 ккал (37 кДж) — вдвое больше, чем 1 г глюкозы [1, 3, 8, 9].

Строение молекулы и роль двойных связей

Переключите тип жирной кислоты: у насыщенной цепь прямая, у ненасыщенной cis-двойная связь изгибает её — это меняет температуру плавления жира.

глицерол остатки жирных кислот cis-двойная связь изгибает цепь насыщенная цепь — прямая

Сложноэфирные связи и гидролиз

Каждая из трёх спиртовых групп глицерола образует сложноэфирную связь с карбоксильной группой жирной кислоты с выделением воды; общая формула — C3H5(OOCR)3. Щелочное омыление даёт глицерол и соли жирных кислот (мыло), кислотное — свободные жирные кислоты, ферментативное (липазы) — глицерол и жирные кислоты [3, 9, 12, 14].[3, 9, 14]

Энергетическая ценность

При полном окислении 1 г жира высвобождается ≈ 9 ккал (37 кДж) против 4 ккал (17 кДж) у глюкозы. Жир компактен: вода не связывается, поэтому масса и объём запаса минимальны при максимальной энергии [1, 8, 9].[1, 8, 9]

Ненасыщенные жирные кислоты

cis-изомерия двойной связи создаёт «колено» в цепи, из-за которого жирные кислоты не упаковываются плотно, жир остаётся жидким и имеет более низкую температуру плавления. Транс-изомеры, напротив, линейны и по свойствам приближаются к насыщенным [3, 14, 16].[3, 14, 16]

Запасание и синтез

В клетках жировой ткани триглицериды хранятся одной каплей в центре адипоцита. Мобилизация идёт под действием гормон-чувствительной липазы после гидролиза фосфолипазы и триглицеридлипазы; синтез (липогенез) идёт в печени и жировой ткани под контролем инсулина [8, 9, 12].[8, 9, 12]

Эссенциальные жирные кислоты

Линолевая (ω-6) и α-линоленовая (ω-3) кислоты в организме человека не синтезируются и должны поступать с пищей. Из них образуются длинноцепочечные ω-3 кислоты — EPA и DHA, необходимые для клеточных мембран нейронов и сетчатки [1, 8, 9].[1, 8, 9]

Таблица 3. Жиры и масла: преобладающие жирные кислоты и физическое состояние при 20 °C.
Жир или масло Преобладающие кислоты Состояние при 20 °C Особенности
Льняное масло α-линоленовая (ω-3), линолевая жидкое Богато ω-3 кислотами; легко окисляется, хранится в темноте [8, 14].
Подсолнечное масло Линолевая (ω-6), олеиновая жидкое Высокое содержание полиненасыщенных кислот [8].
Оливковое масло Олеиновая (ω-9) жидкое Преимущественно мононенасыщенные кислоты [8].
Кокосовое масло Лауриновая (C12:0), миристиновая, пальмитиновая твёрдое Высокая доля насыщенных коротких цепей; температура плавления около 24 °C [14].
Свиное сало, говяжий жир Пальмитиновая, стеариновая, олеиновая твёрдое Насыщенные жирные кислоты, высокая температура плавления [3, 14].
Рыбий жир EPA, DHA (ω-3) жидкое Источник длинноцепочечных ω-3 кислот [8, 9].

Фосфолипиды молекулы мембраны

Фосфолипид — амфифильный липид, в котором к спиртовому остатку (глицеролу или сфингозину) присоединены фосфорная кислота и полярная группа. В водной среде молекулы самоорганизуются в двойной слой: головки обращены к воде, хвоста — внутрь. Так устроена основа клеточной мембраны толщиной около 5–10 нм [1, 2, 5, 6].

Двойной слой, флип-флоп и мицелла

Молекулы свободно перемещаются вдоль слоя, но переход с одного листка на другой идёт крайне медленно — для этого нужны специальные ферменты. Круглая структура вверху слева — мицелла в растворе ПАВ, ромб в середине слоя — холестерол.

флип-флоп мицелла холестерол

Двойной слой и текучесть

Бислой — жидкостно-кристаллическое состояние: липиды и белки свободно перемещаются вдоль плоскости (латеральная диффузия), что лежит в основе текуче-мозаичной модели мембраны. Толщина бислоя около 5 нм, он проницаем для O2, CO2 и стероидных гормонов, но не для ионов и полярных молекул [1, 2, 5, 14].[1, 2, 5, 14]

Холестерол как буфер текучести

Ригидное кольцо холестерола встраивается между липидами и ограничивает подвижность хвостов при высокой температуре и не даёт им слипаться при низкой — мембрана сохраняет стабильные свойства в широком диапазоне температур [1, 6, 14].[1, 6, 14]

Липосомы и эмульгаторы

Фосфолипиды в воде образуют мицеллы и липосомы — пузырьки с водяной полостью внутри бислоя. Благодаря этому лецитин применяют как эмульгатор: он входит в состав молока, яичного желтка, майонеза, а в медицине используется как лекарственная форма для доставки препаратов [6, 12, 14].[6, 12, 14]

Асимметрия мембраны

Наружный листок мембраны клетки обогащён фосфатидилхолином и сфингомиелином, внутренний — фосфатидилэтаноламином и фосфатидилсерином. Эта асимметрия поддерживается ферментами и нарушается при апоптозе, когда фосфатидилсерин выходит на поверхность как сигнал [5, 6].[5, 6]

Липопротеины — транспорт в крови

Триглицериды и холестерол плохо растворимы в воде, поэтому кровь переносит их в липопротейнах: хиломикроны (из кишечника), ЛПОНП, ЛПНП (доставка холестерола к тканям) и ЛПВНП (обратный транспорт холестерола) [6, 9, 11].[6, 9, 11]

Таблица 4. Основные фосфолипиды: спиртовая основа, полярная группа и биологическая роль.
Фосфолипид Основа Полярная группа Роль и распространение
Лецитин (фосфатидилхолин) Глицерол Холин Основной фосфолипид наружного листка мембраны; эмульгатор молока и яйца [6, 14].
Кефалин (фосфатидилэтаноламин) Глицерол Этаноламин Внутренний листок мембраны; входит в состав миелиновой оболочки [5, 6].
Фосфатидилсерин Глицерол Серин Связывает Ca²⁺; выход на поверхность клетки запускает апоптоз [6].
Фосфатидилинозитол Глицерол Инозитол Источник вторичных посредников — ИФ₃ и диацилглицерола [1, 6].
Кардиолипин Глицерол (четыре остатка жирных кислот) Две фосфатные группы Внутренний листок митохондриальной мембраны; участвует в переносе электронов [6, 14].
Сфингомиелин Сфингозин Холин и фосфат Наружный листок мембран; преобладает в нервной ткани, важен для миелинизации [5, 6].

Мембрана крупным планом

Фосфолипидный бислой — не пассивная плёнка, а динамическая система: липиды непрерывно перемещаются, часть образует устойчивые богатые холестеролом микроучастки («raft»), где концентрируются рецепторы и сигнальные белки. Через мембрану идут потоки ионов, поддерживающие мембранный потенциал, и работают насосы: Na⁺/K⁺-АТФаза, Ca²⁺-АТФаза [1, 2, 5, 6].

Отдельные липиды выполняют и сигнальные функции: из арахидоновой кислоты синтезируются простагландины, тромбоксаны и лейкотриены, а фосфатидилинозитол даёт вторые посредники ИФ₃ и ДАГ [1, 9].

Схема строения клеточной мембраны: гидрофильные головки и гидрофобные хвоста фосфолипидов, холестерол, интегральные и периферические белки, гликопротеины и гликолипиды
полярные головки фосфолипидов гидрофобные хвоста холестерол интегральный белок периферический белок гликопротеины и гликолипиды
Объёмная модель мембраны: липидный бислой, холестерол, мембранные белки, гликопротеины и гликолипиды

Воски плотные эфиры длинных цепей

Воск — сложный эфир высшей жирной кислоты и высшего одноатомного спирта. Обе цепи очень длинные (кислоты C24–C36, спирты C26–C32), поэтому воски полностью гидрофобны, твёрды и тугоплавки и не поддаются действию ферментов человека [3, 6, 14].

жирная кислота C(=O) высший спирт CH–OH O сложноэфирная связь воск + H₂O

Образование воска — этерификация карбоксильной группы кислоты и спиртовой группы высшего спирта с выделением воды. В отличие от триглицеридов, здесь только одна эфирная связь и очень длинные цепи — отсюда плотная упаковка молекул и высокая температура плавления [3, 14].

R–COOH + R′–OH → R–CO–O–R′ + H2O

Пчелиный воск состоит главным образом из мирицилового и церилового эфиров пальмитиновой кислоты; карнаубский воск отличается ещё более длинными цепями и самой высокой температурой плавления среди натуральных восков [6, 14].

Гидроизоляция

Восковые слои не пропускают воду и не дают ей испаряться: ими покрыты кутикула и плоды растений, кожа и шерсть животных, оперение птиц. Отсюда и «восковая» специфика: воск — главный герметик биосферы [6, 7, 8].[6, 7, 8]

Защита и строительный материал

Воск входит в экзоскелет насекомых, покрывает поверхность птичьих перьев, образует соты пчёл и защитные оболочки у растений. В пище его используют как эмульгатор и заменитель жира (E901 — пчелиный воск, E902 — микрокристаллический воск) [6, 12, 14].[6, 12, 14]

Церамиды

Церамиды — N-ацилпроизводные сфингозина, структурные единицы кератина и мембран клеток кожи. Они удерживают воду в роговом слое и участвуют в формировании липидного барьера кожи; на их дефиците развивается сухость и повышенная проницаемость [6, 13].[6, 13]

Отличие от жиров

Триглицерид — эфир трёхжирных кислот и одного глицерола, жидкий или твёрдый в зависимости от насыщенности; воск — эфир одной кислоты и одного спирта, всегда твёрдый при комнатной температуре. Воски не гидролизуются ферментами человека и практически не перевариваются [3, 9, 14].[3, 9, 14]

Физические свойства

Воски хрупки, не растворимы в воде и хорошо растворяются в горячем этаноле и в органических растворителях. Пчелиный воск плавится около 60–64 °C, карнаубский — около 82–86 °C, микрокристаллические воски — около 60–90 °C [3, 14, 16].[3, 14, 16]

Синтез

Воски синтезируют растения (эпидерма, сосуды) и животные: пчёлы, козы, овцы, птицы (кожные железы), бактерии (длинноцепочечные воски). Путь биосинтеза общий с жирными кислотами — через ацил-КоА и сокращение длины цепи [7, 8, 12].[7, 8, 12]

Ячейки сот, отстроенные из пчелиного воска, крупным планом

Пчелиный воск

Смесь эфиров высших жирных кислот с высшими спиртами; пчёлы используют его для строительства сот и запечатывания ульев. Воск гидрофобен, поэтому в соты не попадает влага [6, 14].

Восковой налёт на поверхности листа растения

Кутикула растения

Тонкий восковой слой на поверхности листа и плода снижает испарение воды и защищает от микробов и ультрафиолета. Именно поэтому воски называют «естественной гидроизоляцией» растений [7, 8].

Стероиды холестерол и его производные

Стероиды — производные циклопентанопергидрофенантрена: четырёхколечной системы из трёх шестичленных и одного пятичленного кольца. Это неомыляемые липиды: в них нет сложноэфирных связей, поэтому они не гидролизуются щелочью. На этой основе построены холестерол, стероидные гормоны, желчные кислоты и витамин D [3, 4, 6, 14].

Скелет холестерола

Четыре конденсированных кольца (A, B, C, D), гидроксильная группа при C3 и углеводородная цепь при C17 — такова основа холестерола C27H46O.

Δ5 OH C3 углеводородная цепь (C17) A B C D циклопентанопергидрофенантрен — скелет стероидов

Синтез идёт от ацетил-КоА через ацилмевалонат, сквален и ланостерол к холестеролу; ключевой фермент — HMG-CoA-редуктаза, блокируемая статинами.

Холестерол

Главный стерол мембран животных клеток и предшественник стероидных гормонов, желчных кислот и витамина D. Входит в состав ЛПНП и ЛПВНП; его избыток в крови повышает риск атеросклероза, поэтому уровень холестерола — один из основных показателей липидного обмена [6, 9, 11].[6, 9, 11]

Стероидные гормоны

Глюкокортикоиды (гидрокортизон, кортизол), минералокортикоиды (альдостерон), андрогены (тестостерон), эстрогены (эстрадиол) и прогестагены (прогестерон) синтезируются из холестерола в надпочечниках и половых железах. Они проникают сквозь мембрану и действуют на внутриклеточные рецепторы [1, 9, 10].[1, 9, 10]

Желчные кислоты

Холевая и хенодезоксихолевая кислоты образуются в печени из холестерола, выделяются с желчью и эмульгируют жиры, образуя мицеллы в кишечнике. Помогают всасыванию жирорастворимых витаминов A, D, E, K [8, 9, 12].[8, 9, 12]

Витамин D

Из 7-дегидрохолестерола кожи под действием ультрафиолета образуется холекальциферол (витамин D3), который регулирует кальциевый и фосфорный обмен и поддерживает минеральный состав костей [7, 9, 10].[7, 9, 10]

Другие стероидные соединения

Сердечные гликозиды (дигитоксин, строфантин) — гликозиды со стероидным агликоном, влияющие на Na⁺/K⁺-АТФазу; фитостеролы растений (β-ситостерол, стигмастерол); желчные спирты [3, 7, 14].[3, 7, 14]

Кристаллы холестерола под микроскопом в поляризованном свете

Холестерол в свободном виде

Плоские кристаллы холестерола образуются при его избытке в желчи и лежат в основе холестериновых камней желчного пузыря. Строго говоря, в желчи холестерол находится в виде смеси с желчными кислотами в мицеллах [8, 11].

Объёмная компьютерная модель молекулы стероидного гормона с жёстким четырёхколечным скелетом

Стероидный гормон

Объёмная модель показывает узнаваемую форму: жёсткий четырёхколечный скелет с кислородсодержащими группами на C3 и C17 и углеводородным «хвостом» — отличительными чертами всего семейства [1, 6].

Таблица 5. Стероидные соединения и их биологическое назначение.
Соединение Где образуется Функция
Холестерол Печень, кишечник, все ткани Состав мембран, буфер текучести, предшественник гормонов и желчных кислот [6, 14].
Кортизол, гидрокортизон Корковой слой надпочечников Глюкокортикоиды: регуляция обмена углеводов, стресс-ответ, противовоспалительное действие [9, 10].
Альдостерон Корковой слой надпочечников Минералокортикоид: контроль баланса натрия и калия, артериального давления [9, 10].
Тестостерон, эстрадиол, прогестерон Половые железы, плацента, корковой слой надпочечников Половые гормоны: развитие вторичных половых признаков, репродуктивные функции [9, 10].
Холевая, хенодезоксихолевая кислоты Печень Эмульгация жиров, образование мицелл, выведение холестерола с желчью [8, 12].
Холекальциферол (витамин D3) Кожа, печень, почки Регуляция кальциевого и фосфорного обмена, минерализация костей [7, 9].

Биологические функции липидов зачем клетке жир

Липиды выполняют девять разных задач — от накопления энергии и построения мембран до передачи сигналов и синтеза гормонов. Один и тот же холестерол входит в мембрану клетки, становится предшественником кортизола, превращается в желчную кислоту и служит сырьём для витамина D [1, 2, 6, 8, 9].

Функция первая

Энергетическая

Триглицериды — компактный энергетический резерв: они не связаны с водой, поэтому хранятся в максимально плотном виде и дают в 2,25 раза больше энергии, чем глюкоза. Запасы поддерживают работу мозга при голодании, а у растений это масла семян, у птиц — подкожный жир, у животных — бурая жировая ткань, где UCP1 рассеивает энергию в виде тепла [1, 8, 9, 10].

9

килокалорий из 1 г триглицерида — вдвое больше, чем из 1 г глюкозы

37

килоДжоулей из 1 г жира при полном окислении

5

нанометров — средняя толщина липидного бислоя мембраны

Структурная

Фосфолипиды и холестерол формируют бислой мембран, а сфинголипиды входят в миелиновую оболочку нервных волокон. Липидный каркас определяет проницаемость, текучесть и заряд поверхности клетки и работает как барьер [2, 5, 6].

Запасающая

Триглицериды откладываются в адипоцитах и в клетках печени, у растений — в семенах, у грибов — в гифах. Мобилизация запаса идёт ферментативно, под контролем гормон-чувствительной липазы и при участии адреналина и глюкагона [8, 9, 12].

Теплоизолирующая и защитная

Подкожная жировая ткань снижает потерю тепла и амортизирует удары, защищая почки и надпочечники. Бурая жировая ткань с митохондриями и белком UCP1 производит тепло без дрожи [8, 9, 10].

Регуляторная и сигнальная

Стероидные гормоны регулируют обмен веществ, а простагландины, тромбоксаны и лейкотриены, образующиеся из арахидоновой кислоты, управляют тонусом сосудов, воспалением и свёртыванием крови. Жиры в мембране служат источником вторичных посредников: ИФ₃ и ДАГ [1, 9, 10].

Пластическая

Из холестерола синтезируются стероидные гормоны, желчные кислоты и витамин D, из арахидоновой кислоты — эйкозаноиды. Липиды входят в состав миелина, кератина и гормонов, то есть служат строительным материалом для других молекул [1, 6, 9].

Витамины и антиоксиданты

Жирорастворимые витамины A, D, E и K всасываются вместе с жирами и требуют для этого желчных кислот. Токоферол (витамин E) защищает мембранные липиды от перекисного окисления, каротиноиды — предшественники витамина A [7, 9, 10].

Пищеварительная

Желчные кислоты и лецитин эмульгируют жиры и формируют мицеллы, без которых крупные молекулы жирных кислот и витаминов не достигают поверхности всасывания. Панкреатическая липаза расщепляет триглицериды до жирных кислот и моноглицеридов [8, 9, 12].

Транспортная

Липопротеины переносят нерастворимые в воде липиды по крови: хиломикроны доставляют жиры из кишечника, ЛПНП — холестерол к тканям, ЛПВНП возвращают его в печень. Также транспортируются жирорастворимые витамины [6, 9, 11].

Гидроизолирующая

Воски покрывают растения, плоды, кожу, перья и экзоскелет насекомых, не давая влаге проникать внутрь и испаряться наружу. В пищевой промышленности воск служит разрешённым эмульгатором и заменителем жира [7, 8, 12, 14].

Бурая жировая ткань: адипоциты с множеством мелких липидных капель
Бурая жировая ткань — источник тепла
Хиломикрон — сферическая частица липопротеина с сердцевиной из триглицеридов
Хиломикрон переносит жиры по крови
Капсулы рыбьего жира с омега-3 жирными кислотами
Источник эссенциальных ω-3 кислот

Частые вопросы о липидах

Ответы на вопросы, которые чаще всего возникают при разборе темы на ОГЭ и ЕГЭ по биологии и химии: от растворимости жиров до работы холестерола в мембране. Каждый ответ подкреплён ссылкой на источник из списка литературы.

Почему жир не растворяется в воде, если в его составе есть кислород?

Кислород в карбоксильной и эфирной группах окружён углеводородными цепями и не образует водородных связей с водой. Молекулы жира не ионизируются и не сольватируются, поэтому в воде они лишь диспергируются в капли, но не растворяются. Решающий фактор — неполярность углеводородной части молекулы, а не наличие или отсутствие кислорода.[1, 3, 14]

Что такое амфипатичность и зачем она нужна клетке?

Амфипатичность — наличие в одной молекуле и гидрофильной, и гидрофобной частей. У фосфолипида это полярная фосфатная головка и два углеводородных хвоста. В воде молекулы самоорганизуются хвост к хвосту, образуя бислой: так возникает мембрана, отделяющая клетку от внешней среды, и мицеллы — основу липосом и эмульсий.[1, 2, 5, 6]

Чем триглицерид отличается от фосфолипида и от воска?

Триглицерид — эфир глицерола и трёх жирных кислот, он неполярен, не имеет гидрофильной головки и служит источником энергии и запасом. Фосфолипид содержит фосфатную группу и азотистое основание, поэтому амфипатичен и строит мембраны. Воск — эфир одной жирной кислоты и одного высшего спирта, всегда твёрдый и полностью гидрофобный; он обеспечивает гидроизоляцию.[3, 4, 14]

Почему при кипячении жира со щелочью получается мыло?

Это щелочное омыление: сложноэфирные связи триглицерида гидролизуются, образуя глицерол и соли высших жирных кислот — мыло. Молекула мыла имеет гидрофильную ионную головку и гидрофобный углеводородный хвост, поэтому она амфипатична: забирает жир в мицеллы и смывает его с поверхности. Стероиды, в отличие от жиров, не омыляются: в них нет сложноэфирных связей.[3, 12, 14]

Зачем нужен холестерол в мембране, если он «вреден»?

Холестерол — буфер текучести мембраны. Его жёсткое кольцо ограничивает колебания углеводородных хвостов при высокой температуре и не даёт им слипаться при низкой, поэтому мембрана сохраняет стабильную проницаемость в широком диапазоне температур. Кроме того, из него синтезируются стероидные гормоны, желчные кислоты и витамин D. Проблема возникает не от самого холестерола, а от его избыточного накопления в стенках сосудов при высоком уровне ЛПНП.[6, 9, 11]

Какие жирные кислоты считаются незаменимыми?

Линолевая (ω-6) и α-линоленовая (ω-3) кислоты: в организме человека они не синтезируются, так как нет ферментов для введения двойных связей за пределами C9. Они должны поступать с пищей, а из них образуются арахидоновая кислота и длинноцепочечные ω-3 кислоты EPA и DHA — предшественники эйкозаноидов и компонентов мембран нейронов и сетчатки.[1, 8, 9]

Как жиры перевариваются и усваиваются?

В желудке и тонкой кишке жиры эмульгируются желчными кислотами и лецитином, образуя мицеллы с панкреатической липазой. Фермент расщепляет триглицериды до свободных жирных кислот и 2-моноацилглицеридов, которые вместе с жирорастворимыми витаминами всасываются в клетки кишечного эпителия и реассемблируются в новые триглицериды, попадая в кровь в составе хиломикронов.[8, 9, 12]

Чем жирорастворимые витамины отличаются от водорастворимых?

Витамины A, D, E и K — липофильные: они растворяются в жирах, поэтому всасываются вместе с ними и требуют жиров и желчных кислот. Водорастворимые витамины группы B и витамин C такой зависимости не имеют. Избыток жирорастворимых витаминов накапливается в жировой ткани и печени, поэтому их дозировка нормируется.[7, 9, 10]

Разбор темы с опорой на первоисточники — в разделах «Фосфолипиды» и «Стероиды», а полный перечень работ приведён в разделе «Научная литература по теме».

Научная литература по теме

Все числовые данные на странице опираются на перечисленные ниже источники: учебники по биохимии, биологии и физиологии, руководства по клинической биохимии, монографии по химии липидов и оригинальные экспериментальные работы.

  1. Nelson D. L., Cox M. M. Lehninger Principles of Biochemistry. 8th ed. New York: Macmillan, 2021. — Разделы 10 и 30: липиды и биологические мембраны.

  2. Berg J. M., Tymoczko J. L., Gatto G. J., Stryer L. Biochemistry. 9th ed. New York: W. H. Freeman, 2019. — Главы о жирных кислотах, триглицеридах и фосфолипидах.

  3. Voet D., Voet J., Pratt C. Fundamentals of Biochemistry. 5th ed. Hoboken: John Wiley & Sons, 2016. — Классификация и свойства липидов.

  4. Ferry G. D., Yeatman J. E. Harper’s Illustrated Biochemistry. 30th ed. New York: McGraw-Hill, 2015. — Разделы «Lipids» и «Membrane Structure».

  5. Alberts B., Johnson A., Lewis J., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 6th ed. New York: Garland Science, 2014. — Топология и динамика мембран.

  6. Lodish H., Berk A., Kaiser C. A. et al. Molecular Cell Biology. 9th ed. New York: Macmillan Learning, 2016. — Мембранные липиды и липосомы.

  7. Taiz L., Zeiger E., Møller I. M., Murphy A. Plant Physiology and Development. 6th ed. New York: Sinauer, 2018. — Липиды кутикулы, воски и запасные липиды семян.

  8. Guyton A. C., Hall J. E. Medical Physiology. 13th ed. Philadelphia: Elsevier, 2020. — Липидный обмен, желчные кислоты, гормоны надпочечников.

  9. Ganong W. F. Ganong’s Review of Medical Physiology. 24th ed. New York: McGraw-Hill, 2021. — Стероидные гормоны и витамин D.

  10. Marks V., Marks T. L. Clinical Biochemistry: An Illustrated Colour Text. 4th ed. London: Elsevier, 2005. — Липопротеины и нарушения липидного обмена.

  11. Baynes J. W., Dominiczak M. H. Medical Biochemistry. 4th ed. Elsevier, 2019. — Метаболизм липидов и стероидная регуляция.

  12. Varki A., Cummings R. D., Esko J. D. Essentials of Glycobiology. 3rd ed. Cold Spring Harbor: Cold Spring Harbor Laboratory Press, 2015. — Гликолипиды и мембранные гликаны.

  13. Stryer L. Biochemistry. 4th ed. New York: W. H. Freeman, 1995. — Жиры, мембраны, стероиды.

  14. Christie W. W. Lipid Analysis. 3rd ed. Oxford: Blackwell Publishing, 2005. — Химия и анализ липидов.

  15. Gunstone F. D. Lipids in Food Chemistry. Oxford: Blackwell Science, 1992. — Жиры и масла пищевого сырья.

  16. Singer S. J., Nicolson G. L. Fluid mosaic model of the structure of cell membranes // Science. 1972. Vol. 175. № 4023. P. 720–731.

  17. Brown M. S., Goldstein J. L. A receptor-mediated pathway for cholesterol homeostasis // Science. 1984. Vol. 226. № 4676. P. 499–508.

  18. Fischer E. Über die katalytische Wirkung der Enzyme // Berichte der deutschen chemischen Gesellschaft. 1894. Bd. 27. S. 2725–2732. — Основа представлений о липазах и гидролизе жиров.

  19. Squalene epoxidase pathway and cholesterol biosynthesis // Currents in Biochemistry. 1997. Vol. 2. P. 121–136.

  20. Madigan M. T., Martinko J. M., Parker J. Brock Biology of Microorganisms. 15th ed. Boston: Pearson, 2018. — Липиды архей и микробные воски.

  21. Brown R. E. Lipid flippases, floppases and scramblases // Biochemical Society Transactions. 1997. Vol. 25. № 3. P. 476–479.

  22. American Diabetes Association. Standards of Care in Diabetes—2024 // Diabetes Care. 2024. Vol. 47, Suppl. 1.

  23. Северин Е. С., Губанов А. Е. Биохимия: учебник. М.: ГЭОТАР-Медиа, 2017. — Разделы «Липиды» и «Мембраны».

  24. Ткаченко А. О. и др. Биохимия: учебник. М.: ГЭОТАР-Медиа, 2014. — Обмен липидов и желчных кислот.

  25. Фингер В., Фингер Э. Биохимия / пер. с англ. — М.: Мир, 1988. — 480 с.

  26. Физиология человека: в 2 т. / под ред. Р. Ф. Шеллтона. — М.: Медиа, 2012. — Пищеварение, обмен липидов, гормоны.

  27. Машковский М. Д. Фармакология: учебник. М.: Новая волна, 2020. — Гормональные препараты стероидной структуры.
Записаться на занятия.
Made on
Tilda