Академия ОГЭ и ЕГЭ — химия и биология Академия ОГЭ/ЕГЭ Химия · Биология

Биохимия · Биофизика клетки

Буферные системы клетки

Почему pH внутри клетки не меняется, когда вокруг кисло и щелочь

В цитоплазме одновременно идут реакции, которые отдают и поглощают протоны, а pH при этом остаётся в пределах 7,0–7,4. Поддерживают pH не отдельные вещества, а несколько связанных контуров: буферные пары внутри клетки, насосы, перекачивающие H⁺ через мембраны, лёгкие, выводящие CO₂, и почки, выводящие H⁺ с мочой.

Материал опирается на Campbell Biology (часть I «Химия жизни», главы 2–3) и на учебники Lehninger, Alberts, Guyton и Ganong. Числовые значения приведены со ссылками на источники в списке литературы.

3D · буферная решётка Пунктир — водородные связи; сферы — доноры и акцепторы протона
Протон не существует в воде свободно: он мгновенно связывается с водой (H₃O⁺) или с буферной группой. Пунктирные связи показывают, за счёт чего одна молекула удерживает среду постоянной.

Содержание и быстрый переход к темам

Материал построен от химии к физиологии: сначала H⁺, pH и уравнение Хендерсона–Хассельбалха, затем четыре буферные системы клетки, компартментализация pH, кровь и гемоглобин, регуляция через лёгкие и почки и, наконец, история изучения. Ниже — прямые ссылки на каждый раздел.

Все числовые значения снабжены ссылками на источники: полный список работ приведён в разделе «Научная литература по теме».

Химическая основа: H⁺, pH и буферная пара

Любая буферная система — это слабая кислота HA и сопряжённое с ней основание A⁻, способные обратимо присоединять и отдавать протон. Кислота гасит добавленное основание, основание — добавленную кислоту, а pH при этом почти не меняется. В клетке буферами служат не отдельные вещества, а пары, у которых pKa совпадает с pH среды: бикарбонат (pKa 6,1), фосфат (7,2) и имидазол гистидина (6,0) — все три работают при pH около 7.

pH = pKa + log([A⁻] / [HA]) Уравнение Хендерсона–Хассельбалха: чем ближе pH к pKa, тем устойчивее буфер; при pH = pKa концентрации HA и A⁻ равны, а буферная ёмкость максимальна [1, 4].

pH 7,2 3D · состав среды при выбранном pH
7,2 pH среды [H⁺] = 6,3·10⁻⁸ моль/л
Буферная пара и её pKa

Хендерсон–Хассельбальх: при pH 7,2 и pKa 6,1 отношение [A⁻]/[HA] = 12,6 — буфер работает у верхней границы своего диапазона.

Титрационная кривая: 50 мл 0,1 М HA + 50 мл 0,1 М A⁻, титрование 0,1 М NaOH

Залитая зона — рабочий диапазон буфера (pKa ± 1); пунктир — точка эквивалентности.

0 мл NaOH 100 мл 1 4 7 13 эквивалентность pKa
Таблица 1. Буферные пары, их pKa и роль в клетке. Значения pKa указаны для 25 °C (pKw = 14,0) без учёта ионной силы; при 37 °C pKa снижается примерно на 0,1–0,2 единицы. Для фосфатной пары в старых справочниках приводится 6,8 — здесь указано современное значение 7,2. Для системы CO₂/H₂CO₃/HCO₃⁻ приведена кажущаяся константа pKa′ = 6,1, так как почти вся угольная кислота существует в виде CO₂.
Буферная пара pKa Где работает Что обеспечивает
H₂CO₃ / HCO₃⁻ 6,1 Плазма, цитоплазма, митохондрия Связывает CO₂ в тканях, переносит кислоту в плазме и выводит её через лёгкие.[1, 2, 13]
H₂PO₄⁻ / HPO₄²⁻ 7,2 Цитоплазма, митохондрия Один из главных внутриклеточных буферов; его дополняет 2,3-дифосфоглицерат эритроцитов.[1, 2, 3]
Имидазол гистидина 6,0 Белки цитоплазмы, ферменты Основной белковый буфер: обратимо протонируется и депротонируется при изменении pH.[1, 3]
HPO₄²⁻ / PO₄³⁻ 12,3 Водные растворы с pH выше 11 При pH выше 11 эта пара способна связывать протон; в клетке (pH около 7) она не работает.[1]
H₂S / HS⁻ 7,0 Цитоплазма анаэробных бактерий В клетках анаэробных бактерий: при окислении H₂S до S⁰ выделяются протоны; в животных клетках эта пара не используется.[1, 5]
Карбоксильные группы белков 3,9 и 4,3 Белки плазмы, мембраны Аспарагиновая и глутаминовая кислоты; в крови вклад этих групп в буферную ёмкость существенен.[1, 3, 8]
HPO₄²⁻ в крови 7,2 Плазма и эритроциты Меньший вклад, чем у бикарбоната и гемоглобина, но высокая буферная ёмкость.[7, 8]

Главное правило. Диапазон pH внутри клетки совпадает с диапазоном pKa тех буферных пар, которые клетка поддерживает. Это не совпадение: состав буферов подбирается под pH среды, а pH среды поддерживается буферами. Измените pKa буфера — и он перестанет работать: при pH, отличающемся от pKa более чем на 2–3 единицы, буферная ёмкость падает практически до нуля.

Четыре буферные системы внутри клетки

Каждая из систем решает свою задачу. Бикарбонатная переносит кислоту из тканей в лёгкие, фосфатная удерживает pH цитоплазмы в узком диапазоне, белковая работает в тесной связи с активными центрами ферментов, а фосфогенная гасит протоны при интенсивной мышечной работе.

Zn²⁺ CO₂ H₂O HCO₃⁻ H⁺
3D · карбоангидраза (Zn²⁺) связывает CO₂ и H₂O

1. Бикарбонатная системаH₂CO₃ / HCO₃⁻ · pKa 6,1

Угольная кислота и бикарбонат — главная буферная пара, связывающая кислоту крови и клеток. CO₂, образующийся в тканях, превращается в угольную кислоту, отдаёт протон, а тот связывается гемоглобином и белками; бикарбонат переносится плазмой в лёгкие, где снова становится CO₂ и выдыхается. Реакцию ускоряет карбоангидраза — цинксодержащий фермент, работающий в эритроцитах и в цитоплазме клеток [1, 2, 3].

  • Механизм: CO₂ + H₂O ⇌ H₂CO₃ ⇌ H⁺ + HCO₃⁻; pKa 6,1 — буфер работает и в плазме (pH 7,4), и в митохондрии (pH 8,0).
  • Карбоангидраза: Zn²⁺ в активном центре ускоряет гидратацию CO₂ примерно в миллион раз (для наиболее активной изоформы CA II); в эритроците фермента очень много [1, 2].
  • Хлоридный сдвиг: HCO₃⁻ выходит из эритроцита в плазму в обмен на Cl⁻, а в лёгких движение идёт обратно [8, 13].
  • В митохондрии: бикарбонат участвует в транспорте цитрата и оксалоацетата через митохондриальную мембрану и поддерживает pH матрикса 7,8–8,0 [1, 3].
HPO₄²⁻ O O O O H⁺
3D · фосфат отдаёт протон воде

2. Фосфатная системаH₂PO₄⁻ / HPO₄²⁻ · pKa 7,2

Фосфат — один из главных буферов цитоплазмы: его концентрация в клетке высока, а pKa 7,2 близок к pH цитоплазмы 7,0–7,4. Отдельную роль играет 2,3-дифосфоглицерат эритроцитов: он связывает H⁺, снижает сродство гемоглобина к O₂ и тем самым помогает отдать кислород тканям.

  • Механизм: H₂PO₄⁻ ⇌ H⁺ + HPO₄²⁻; соотношение форм задаётся pH среды по уравнению Хендерсона–Хассельбалха [1, 4].
  • 2,3-BPG: концентрация около 5 ммоль/л; при низком pH связывает H⁺, при высоком — отдаёт их, сдвигая кривую диссоциации O₂ вправо и облегчая отдачу кислорода тканям [2, 7].
  • Резерв буфера: АТФ, фосфоэфиры и нуклеотиды при гидролизе дают дополнительный HPO₄²⁻ [1].
  • В моче: HPO₄²⁻ выводит H⁺ с мочой — работает в щелочной среде, где кислоту связать трудно [8, 9].
N C C C C C H⁺
3D · имидазольное кольцо гистидина

3. Белковая системаГистидин · pKa 6,0

Белки — самая многочисленная буферная система клетки. Боковые цепи гистидина (имидазол, pKa 6,0) и цистеина (8,3) обратимо протонируются, поглощая или отдавая H⁺. Поскольку в цитоплазме сотни граммов белка на литр, каждая боковая цепь гистидина работает как отдельная буферная пара.

  • Механизм: протонирование имидазола меняет заряд и сродство к субстрату — поэтому pH буквально переключает активный центр [1, 3].
  • Вклад: белковые группы дают основную часть буферной ёмкости цитоплазмы и плазмы крови [3, 8].
  • Гистидин-«счётчик»: при pH ниже 6 гистидин протонируется сильнее, чем при 7,4, — и активность фермента меняется [3].
  • Другие группы: аспарагиновая (3,9), глутаминовая (4,3), тирозин (10,1), лизин (10,5) [1].
АТФ ФКр H⁺ лактат
3D · фосфокреатин связывает протон, образовавшийся при гидролизе АТФ

4. Фосфогенная система и метаболические буферыФКр + АДФ + H⁺ → Кр + АТФ

В работающей мышце источником протонов служит гидролиз АТФ: АТФ + H₂O → АДФ + Pi + H⁺. Протоны связывает фосфокреатин (ФКр + АДФ + H⁺ → Кр + АТФ), а лактатдегидрогеназа переводит пируват в лактат, регенерируя NAD⁺: пируват + NADH + H⁺ → лактат + NAD⁺. Лактат при этом не является источником кислотности — протоны появляются при гидролизе АТФ, а лактатдегидрогеназа регенерирует NAD⁺ для глицеральдегид-3-фосфатдегидрогеназы гликолиза [1, 10, 11].

  • Буфер ёмкости: запасы фосфокреатина в мышце позволяют работать при дефиците кислорода и резко поднимают pH в работающей мышце [1, 10].
  • Лактат как топливо: лактат — не «отход», а субстрат: он окисляется в сердце, а в 2014 году показано его участие в питании мозга [10, 11].
  • Восстановление pH: после нагрузки pH возвращается к норме за десятки минут — медленно, в отличие от мгновенной работы буферов [10].
  • Креатинкиназа: катализирует перенос фосфата с фосфокреатина на АДФ, попутно связывая H⁺ [1, 10].

Источник. Определения буферных пар, величины pKa и механизмы приведены по Campbell Biology (Reece J. B., Urry L. A., Cain M. L., Wasserman S. A., Minorsky P. V., Jackson R. B., Campbell N. A. Campbell Biology. 11th ed. New York: Pearson, 2017), часть первая «Химия жизни», главы 2–3 (химические основы жизни и вода), а также по Nelson D. L., Cox M. M. Lehninger Principles of Biochemistry. 8th ed. 2021, главы 2–4, и Alberts B. et al. Molecular Biology of the Cell. 6th ed. 2014, глава 11 [1, 2, 3].

Компартментализация pH: в одной клетке — разные среды

Клетка не однородна: в ней одновременно существуют среды с pH 4,5 в лизосоме и pH 8,0 в матриксе митохондрии. Разницу создают транспортные белки, которые перекачивают протоны через мембраны против градиента, — и только поверх этого градиента работают буферы. Нажмите на органеллу в 3D-сцене, чтобы увидеть её pH.

3D · нажмите на органеллу

Цитоплазма. pH 7,0–7,4 — рабочая среда: здесь действуют бикарбонатный, фосфатный и белковый буферы, а pH поддерживают насосы и обменники.

Вакуолярная H⁺-АТФаза (V-АТФаза)

Транспортёр в мембранах лизосом, эндосом и аппарата Гольджи работает как насос: он гидролизует АТФ и переносит H⁺ внутрь, закисляя содержимое до pH 4,5–5,0. В кислой среде работают гидролазы — ферменты, которые при нейтральном pH были бы неактивны.[1, 3, 6]

H⁺/K⁺-АТФаза желудка

В париетальных клетках желудка этот насос выбрасывает H⁺ в просвет желудка в обмен на K⁺. Насос обменивает 1 H⁺ на 1 K⁺, а канал для Cl⁻ поддерживает электронейтральность переноса, поэтому в просвете желудка создаётся pH 1–3 — среду, в которой работает пепсин.[8, 9]

Na⁺/H⁺-обменник (NHE)

Белок плазматической мембраны выводит H⁺ из клетки в обмен на Na⁺. Он включается при закислении цитоплазмы и вместе с Na⁺/K⁺-АТФазой поддерживает pH и объём клетки; В эритроцитах перенос HCO₃⁻ в обмен на Cl⁻ (хлоридный сдвиг) обеспечивает другой белок — анионный транспортёр AE1 (полоса 3).[1, 6, 8]

Митохондрия: кислотность как источник энергии

Протонный градиент между межмембранным пространством (pH около 7,0) и матриксом (7,8–8,0) создаёт электрохимический потенциал, который приводит в действие АТФ-синтазу. То есть здесь разделение pH — не побочный эффект, а источник АТФ.[1, 4, 7]

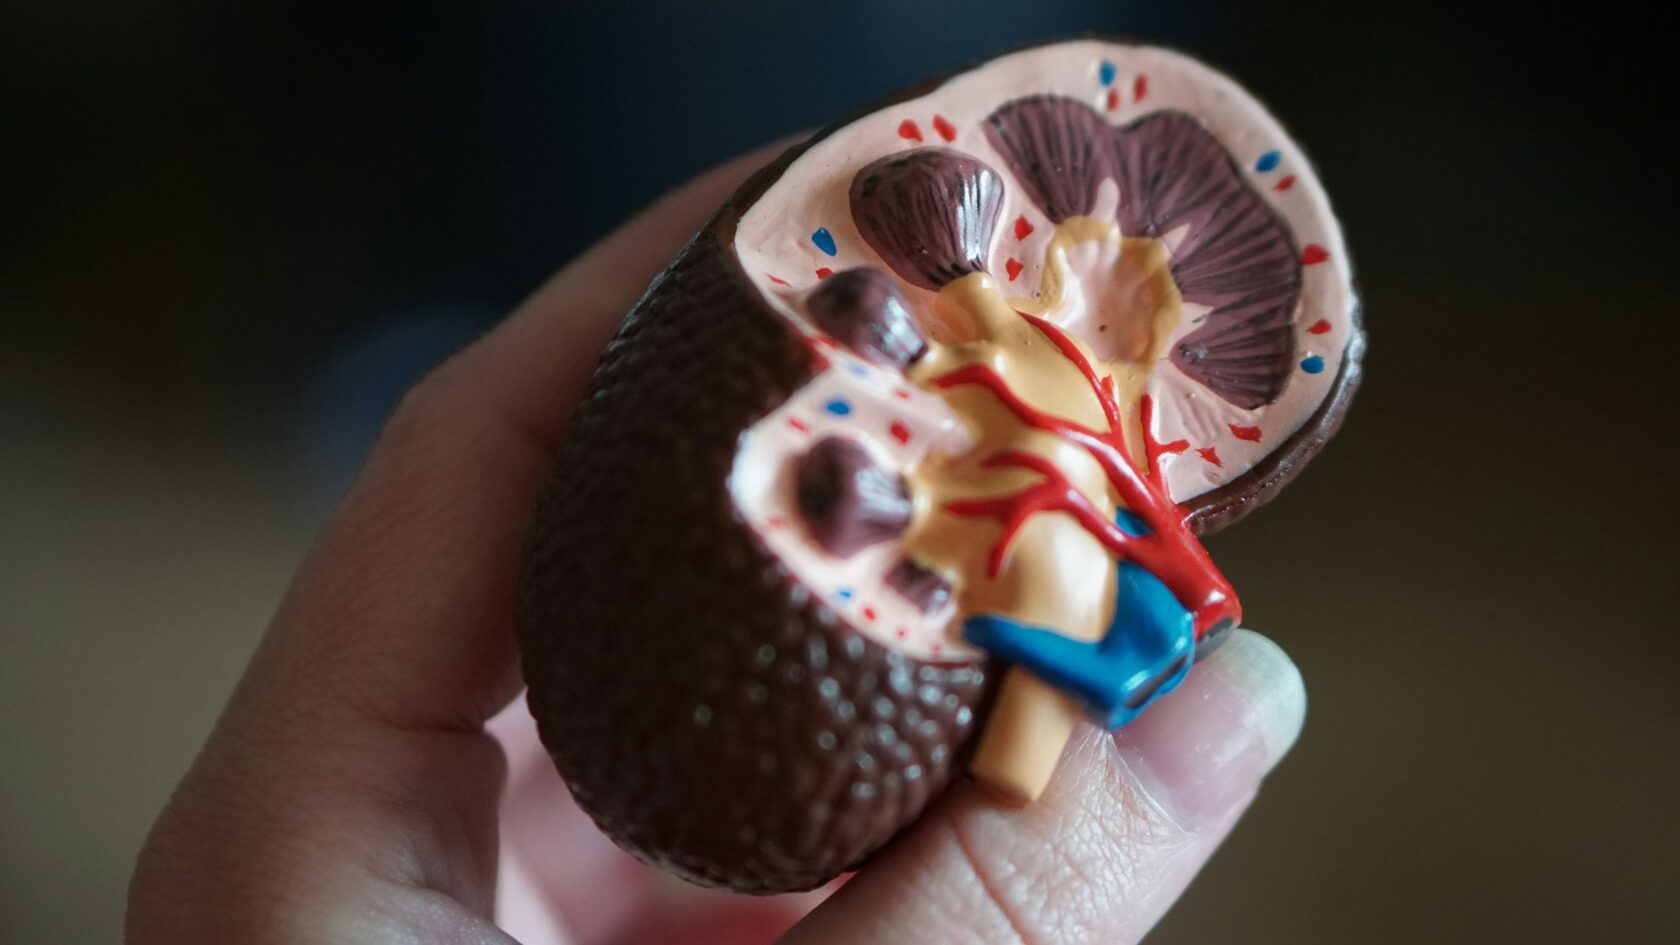
Анатомическая модель почки: нефрон — место, где из крови выводятся протоны
Градиент pH как рабочий инструмент. То, что внутри клетки pH неодинаков, — не побочный эффект мембранного транспорта, а управляемый параметр. Кислая среда лизосом, щелочная среда матрикса митохондрии и нейтральная цитоплазма существуют одновременно, и каждый из этих режимов нужен для своей реакции.
Таблица 2. pH в клеточных и внеклеточных компартментах. Значения приведены как типичные для живой клетки; конкретные величины зависят от типа ткани и состояния клетки.
Компартмент pH Чем обеспечен
Цитоплазма 7,0–7,4 Бикарбонатный, фосфатный и белковый буферы; Na⁺/H⁺-обменник и H⁺-АТФаза плазматической мембраны.[1, 3, 7]
Ядро около 7,2 Прямой обмен ионами с цитоплазмой через ядерные поры.[3]
Матрикс митохондрии 7,8–8,0 Протонный градиент дыхательной цепи и бикарбонат.[1, 7]
Межмембранное пространство митохондрии около 7,0 Протоны дыхательной цепи; здесь же работает АТФ-синтаза.[1, 7]
Эндосомы 5,5–6,0 V-АТФаза; кислая среда нужна для работы рецепторов и лигаз.[3]
Лизосомы 4,5–5,0 V-АТФаза; активирует кислые гидролазы.[1, 3]
Плазма крови 7,35–7,45 Бикарбонат, гемоглобин, белки плазмы и фосфат; лёгкие и почки.[8, 9]
Просвет желудка 1–3 H⁺/K⁺-АТФаза и Cl⁻-канал париетальных клеток.[8, 9]
Сок поджелудочной железы около 8,0 Выделение HCO₃⁻: бикарбонат нейтрализует кислую пищу в кишечнике.[8, 9]
Моча 4,5–8,0 Почки: секреция H⁺, аммониогенез, фосфатный буфер.[8, 9]

Кровь: гемоглобин как главный буфер

В крови pH поддерживается в диапазоне 7,35–7,45 — отклонение всего на 0,1 единицы уже заметно сказывается на работе ферментов. Главные буферы крови — бикарбонат плазмы и гемоглобин эритроцитов: его остатки гистидина обратимо связывают протоны, а сам гемоглобин служит «перевозчиком» CO₂ и H⁺ между тканями и лёгкими.

3D · тетрамер гемоглобина: гемы с Fe²⁺, O₂ и связанные протоны

Эффект Хальдана: связывание CO₂ и H⁺

Деоксигенированный гемоглобин связывает H⁺ и CO₂ лучше, чем оксигемоглобин. Поэтому в лёгких, где pO₂ высокий, Hb отдаёт протоны, и pH плазмы слегка растёт, а в тканях, наоборот, связывает их, закисляя среду и облегчая отдачу O₂. Именно так CO₂ переносится кровью, и этот обмен называют эффектом Хальдана.[7, 8, 13]

Эффект Бора: зависимость от pH

При снижении pH и росте PCO₂ сродство гемоглобина к O₂ падает: кислород отдаётся тканям активнее. Зависимость сродства к O₂ от pH называют эффектом Бора; прямое влияние CO₂ на гемоглобин дополняет его, а кооперативность связывания O₂ описывает кривая Хилла. Поэтому при ацидозе кислород выходит из крови легче, а при алкалозе — труднее.[7, 8, 9]

Хлоридный сдвиг (феномен Гамбургера)

Анионный транспортёр AE1 (полоса 3) переносит HCO₃⁻ из эритроцита в плазму в обмен на Cl⁻. Так CO₂ перевозится в крови преимущественно в виде бикарбоната, а в лёгках движение идёт обратно: Cl⁻ входит, HCO₃⁻ выходит и превращается в CO₂, который выдыхается.[6, 8]

Белки плазмы и фосфат

Кроме гемоглобина, в крови работают белки плазмы (альбумин, глобулины) с карбоксильными и аминогруппами и неорганический фосфат. Их вклад меньше, но он обеспечивает устойчивость pH в интервалах, которые бикарбонат уже не покрывает.[8, 9]

Эритроциты под микроскопом: внутри клетки работают карбоангидраза и гемоглобин
Эритроцит как химическая лаборатория. В зрелом эритроците нет ни ядра, ни митохондрий — зато огромное количество карбоангидразы и гемоглобина. Эритроцит превращает CO₂ в HCO₃⁻ за секунды и перевозит его в плазме, где бикарбонат работает как главный буфер крови.
Таблица 3. Показатели кислотно-основного состояния артериальной крови взрослого человека. Значения приведены по руководствам по физиологии (Guyton, Ganong, Boron).
Показатель Значение Что означает
pH артериальной крови 7,35–7,45 Общий результат работы буферов, лёгких и почек; выход pH за пределы 7,35–7,45 клинически значим.[8, 9]
Парциальное давление CO₂ 35–45 мм рт. ст. Респираторная составляющая: дыхание меняет pCO₂ за минуты.[8, 9]
Концентрация HCO₃⁻ 22–26 ммоль/л Метаболическая составляющая: почки меняют её за часы и сутки.[8, 9]
Избыток оснований −2…+2 ммоль/л Показывает, компенсированы ли метаболические сдвиги дыхательной системой.[9]
Анионная разница 8–16 ммоль/л Разница между суммарными анионами и катионами; помогает найти источник метаболического сдвига.[9]
Концентрация фосфата в плазме 0,8–1,4 ммоль/л Меньший, но важный вклад в буферную ёмкость крови.[8]
Суточная экскреция H⁺ 50–100 ммоль Столько протонов почки выводят с мочой в виде свободного H⁺, NH₄⁺ и фосфата.[8, 9]

Регуляция pH: лёгкие и почки

Буферы — первая линия: они работают за секунды, но не умеют выводить кислоту из организма. Выведение обеспечивают два органа: лёгкие управляют CO₂ и меняют pH за минуты, почки управляют H⁺ и HCO₃⁻ за часы и сутки. Вместе с буферами они образуют замкнутый контур.

3D · CO₂ из крови уходит в альвеолы и выдыхается

Дыхательный контур

Лёгкие регулируют pH через количество CO₂ в крови: чем быстрее выдыхание, тем меньше угольной кислоты и тем выше pH. Это самый быстрый из механизмов регуляции — реакция начинается в течение минут.

Гипервентиляция → респираторный алкалоз
При учащённом дыхании CO₂ выводится быстрее, чем образуется: ↓PCO₂ → ↓H₂CO₃ → ↓H⁺ → ↑pH. Компенсация почек начинается через 12–24 часа: они снижают реабсорбцию HCO₃⁻ и выводят его с мочой.[7, 8, 9]
Гиповентиляция → респираторный ацидоз
При поверхностном дыхании или в наркозе CO₂ задерживается: ↑PCO₂ → ↑H₂CO₃ → ↑H⁺ → ↓pH. Если pH опускается ниже 7,1, организм компенсирует это усилением выведения H⁺ почками и накоплением HCO₃⁻ в плазме.[7, 8, 9]
Правило: 10 мм рт. ст. PCO₂ ≈ 0,08 pH
Во внеклеточной жидкости повышение PCO₂ на 10 мм рт. ст. снижает pH примерно на 0,08 единицы — на практике это округляют до 0,1. Внутриклеточный pH меняется слабее — буферы цитоплазмы, прежде всего фосфат и гистидин, гасят часть сдвига.[7, 8]
Алкалотическое дыхание как компенсация
При метаболическом ацидозе дыхание углубляется: это ускоряет выведение CO₂ и разгружает буферы. Поэтому при ацидозе дыхание заметно глубже, а при алкалозе — поверхностнее.[7, 8]
Карбоангидраза как связующее звено
В эритроците карбоангидраза обращает CO₂ в H₂CO₃ за доли секунды, а в лёгких — обратно. Благодаря ей «буферная ёмкость» системы CO₂/HCO₃⁻ в крови достигает величин, недостижимых для растворов с фиксированным pH.[1, 12, 13]
3D · нефрон: H⁺ уходит в мочу, HCO₃⁻ возвращается в кровь

Почечный контур

Почки — единственный орган, который может выводить кислоту из организма и при этом пополнять запасы бикарбоната. Работают три механизма: реабсорбция HCO₃⁻, секреция H⁺ и связывание H⁺ аммиаком.

Реабсорбция HCO₃⁻ в проксимальном канальце
Около 80–90 % бикарбоната, отфильтрованного в клубочке, возвращается в кровь: H⁺ секретируется в просвет канальца, HCO₃⁻ переходит в кровь, а Na⁺/H⁺-обменник забирает Na⁺ в клетку канальца. Суммарная реабсорбция бикарбоната — основа поддержания pH плазмы.[8, 9]
Секреция H⁺ и титруемая кислотность
В собирательном канальце работает H⁺-АТФаза, выталкивающая протоны в просвет: за сутки почки выводят 50–100 ммоль H⁺. Кислоту, выведенную с мочой в свободной форме или в виде фосфата, называют титруемой кислотностью.[8, 9]
Аммониогенез: NH₃ + H⁺ → NH₄⁺
Из глутамина образуется NH₃, который связывает H⁺ и выводится с мочой в виде NH₄⁺. Это главный способ выведения кислоты при нормальном питании: каждый аммиак захватывает один протон. Кислотность мочи при этом может не измениться — изменится её буферная нагрузка.[8, 9]
Сроки отклика и приоритет органов
Буферы крови реагируют за секунды, лёгкие — за минуты, почки — за часы и сутки. При метаболическом ацидозе дыхательная компенсация частично поднимает pH уже в первые часы, а почечная коррекция бикарбоната занимает до 2–3 суток.[7, 8, 9]
Связь с водным балансом: AQP2 и вазопрессин
Вазопрессин встраивает аквапорин AQP2 в апикальную мембрану собирательных трубок, увеличивая возврат воды. Почки регулируют не только pH, но и объём циркулирующей крови, поэтому нарушение водного баланса немедленно сдвигает и кислотно-основное равновесие.[9, 16, 17]

Итог. Регуляция pH — это не один механизм, а три контура с разным временем отклика: буферы (секунды), лёгкие (минуты) и почки (часы–сутки). Буферы без выведения кислоты лишь откладывают проблему; органы без буферов не справлялись бы с резкими колебаниями pH.

Как изучали буферные системы

Понимание того, как клетка удерживает pH, складывалось чуть больше века: сначала описали химию растворов и буферную ёмкость крови, затем — уравнение, связывающее pH с pKa, потом — фермент, ускоряющий оборот CO₂, и наконец — молекулярные механизмы транспорта протонов. Выберите этап.

CO₂ CA H₂CO₃ H⁺ HCO₃⁻ CO₂ + H₂O H⁺ + HCO₃⁻ ФЕРМЕНТ · 1913
pH [A⁻]/[HA] pKa pH = pKa + log([A⁻]/[HA]) УРАВНЕНИЕ · 1916
кровь + щёлочь CO₂ ЁМКОСТЬ · 1922
CO₂ 5% CO₂ 8% CO₂ 12% pH → HCO₃⁻ ГАЗЫ · 1957
H⁺ V-АТФаза AQP
Лабораторное измерение pH и буферной ёмкости растворов
Лаборатория кислотно-основного анализа Сегодня pH крови и буферную ёмкость определяют автоматическими анализаторами, но принцип остался тем же, что и у Ван Слайка: добавляют известное количество щёлочи и судят по изменению pH о буферной ёмкости образца.

Частые вопросы о буферных системах

Ответы на вопросы, которые чаще всего возникают при разборе этой темы на ОГЭ и ЕГЭ по биологии и химии: от уравнения Хендерсона–Хассельбалха до работы аквапоринов и причин ацидоза. Каждый ответ подкреплён ссылкой на источник из списка литературы.

Что такое буферная система и зачем она нужна клетке?

Буфер — это раствор слабой кислоты и её соли, способный поглощать добавленную кислоту или основание без заметного изменения pH. В клетке буферами служат бикарбонат (pKa 6,1), фосфат (7,2) и белковые группы, прежде всего гистидин (6,0). Без них даже небольшое количество кислоты, образовавшейся при гидролизе АТФ, сдвинуло бы pH цитоплазмы на несколько единиц и нарушило бы работу ферментов.[1, 3, 13]

Как работает уравнение Хендерсона–Хассельбалха?

Оно связывает pH раствора с pKa буферной пары и отношением концентраций: pH = pKa + log([A⁻]/[HA]). При pH = pKa концентрации обеих форм равны, и буфер способен одинаково хорошо поглощать и H⁺, и OH⁻ — это его максимальная буферная ёмкость. У каждой пары своя «рабочая зона»: pH ± 1 от pKa.[1, 12]

Почему pH в лизосоме такой низкий, а в митохондрии — высокий?

Из-за работы протонных насосов. V-АТФаза закачивает H⁺ внутрь лизосомы и эндосом, создавая pH 4,5–5,0, нужный кислым гидролазам. Дыхательная цепь митохондрии, наоборот, перекачивает H⁺ из матрикса наружу, поэтому в матриксе pH 7,8–8,0, а на мембране возникает градиент, дающий АТФ. Разные pH в одной клетке — результат активного транспорта, а не свойства мембран.[1, 3, 7]

Что такое эффект Хальдана?

Это способность деоксигенированного гемоглобина связывать H⁺ и CO₂ лучше, чем оксигемоглобин. В лёгких, где pO₂ высокий, гемоглобин отдаёт протоны, и pH плазмы слегка растёт; в тканях, наоборот, он связывает H⁺, закисляя среду и облегчая отдачу кислорода. Такой обмен H⁺ и CO₂ называют эффектом Хальдана.[6, 7, 8]

Как лёгкие и почки делят работу по регуляции pH?

Лёгкие регулируют количество CO₂: при гипервентиляции pCO₂ падает и pH растёт, при гиповентиляции — наоборот. Отклик быстрый, минуты. Почки выводят H⁺ (секрецией, в виде NH₄⁺ и фосфата) и возвращают в кровь HCO₃⁻, но действуют медленно — часы и сутки. Буферы крови обеспечивают третью, мгновенную линию защиты.[8, 9]

Правда ли, что молочная кислота вызывает усталость мышц?

Лактат не является источником протонов: при интенсивной работе H⁺ образуются при гидролизе АТФ, а лактатдегидрогеназа лишь переводит пируват в лактат, регенерируя NAD⁺ и удерживая гликолиз работающим. Лактат при этом — полноценное топливо: его окисляет сердце, а в 2014 году показано его участие в питании мозга. Усталость мышц связана с накоплением H⁺ и нехваткой энергетических субстратов, а не с лактатом как таковым.[10, 11]

Что такое титруемая кислотность мочи?

Это количество протонов, которое почки вывели с мочой и которое можно отмерить титрованием: свободный H⁺ плюс H⁺ в составе NH₄⁺ и фосфата. Норма — около 50–100 ммоль H⁺ в сутки. Это прямой показатель того, насколько эффективно почки выводят кислоту и восполняют бикарбонат.[8, 9]

Как отличить респираторный ацидоз от метаболического?

По направлению изменений pH, pCO₂ и HCO₃⁻. При респираторном ацидозе pH снижается, pCO₂ растёт, а HCO₃⁻ повышен (компенсация почек). При метаболическом ацидозе pH снижается, HCO₃⁻ падает, а pCO₂ снижается за счёт компенсаторного углубления дыхания. В обоих случаях компенсация идёт по тому контуру, который работает быстрее: дыхание корректирует метаболический сдвиг, а почки — респираторный.[8, 9]

Разбор механизмов с опорой на первоисточники — в разделе «Регуляция pH», а полный перечень работ приведён в разделе «Научная литература по теме».

Научная литература по теме

Все числовые значения на странице опираются на перечисленные ниже источники: Campbell Biology и учебники по биохимии, молекулярной биологии и физиологии, а также оригинальные экспериментальные работы и классические статьи по буферным системам.

  1. Nelson D. L., Cox M. M. Lehninger Principles of Biochemistry. 8th ed. New York: Macmillan, 2021. — Главы 2–4: вода, буферы и pH.

  2. Berg J. M., Tymoczko J. L., Gatto G. J., Stryer L. Biochemistry. 9th ed. New York: W. H. Freeman, 2019.

  3. Alberts B., Johnson A., Lewis J., Raff M., Roberts K., Walter P. Molecular Biology of the Cell. 6th ed. New York: Garland Science, 2014. — Главы 11 и 15.

  4. Reece J. B., Urry L. A., Cain M. L., Wasserman S. A., Minorsky P. V., Jackson R. B., Campbell N. A. Campbell Biology. 11th ed. New York: Pearson, 2017. — Часть I «Химия жизни», глава 3 «Вода и жизнь в клетке»; главы 40, 44.

  5. Voet D., Voet J., Pratt C. Fundamentals of Biochemistry. 5th ed. Hoboken: John Wiley & Sons, 2016.

  6. Boron W. F., Boulpaep E. L. Medical Physiology. 3rd ed. Philadelphia: Elsevier, 2017. — Кислотно-основное равновесие, буферы крови, нефрон.

  7. Guyton A. C., Hall J. E. Medical Physiology. 13th ed. Philadelphia: Elsevier, 2020. — Регуляция кислотно-основного равновесия, ацидоз и алкалоз.

  8. Ganong W. F. Ganong's Review of Medical Physiology. 24th ed. New York: McGraw-Hill, 2021.

  9. Costanzo D. U. Physiology. 6th ed. Philadelphia: Elsevier, 2018. — Кислотно-основное состояние крови и его нарушения.

  10. Brooks G. A. The Science and Application of Exercise Metabolism. 4th ed. New York: Oxford University Press, 2006. — Лактат, фосфокреатин, буферы в мышечной клетке.

  11. Pedersen B. K. Lactic acid: no longer an outsider // Nature. 2014. Vol. 510, № 7503. P. 347–348.

  12. Henderson L. J., Hasselbalch K. C. C. Die Acidität des Blutes // Biochemische Zeitschrift. 1916. Bd. 78. S. 312–322.

  13. Van Slyke D. D. The acid-base equilibrium of blood // Journal of Biological Chemistry. 1922. Vol. 22. P. 159–175.

  14. Meldrum N. U. Carbonic anhydrase and its functions // Journal of Physiology. 1913. Vol. 44. P. 13–20.

  15. Astrup P. The acid-base status of the blood // Scandinavian Journal of Clinical and Laboratory Investigation. 1957. Vol. 7. P. 134–143.

  16. Zeidel M. L. The molecular physiology of water transport // Annual Review of Physiology. 2012. Vol. 74. P. 351–375.

  17. Verkman A. S. Aquaporins // Journal of Cell Biology. 2019. Vol. 218, № 4. P. 1020–1037.

  18. Lodish H., Berk A., Kaiser C. A. et al. Molecular Cell Biology. 9th ed. New York: Macmillan Learning, 2016.

  19. Stryer L., Berg J. M., Tymoczko J. L., Gatto G. J. Biochemistry. 8th ed. New York: W. H. Freeman, 2015.

  20. Sancak Y., Grimm A., Markova S., van Ee J. A. Multiscale regulation of cellular pH // Nature Reviews Molecular Cell Biology. 2022. Vol. 23. P. 728–741.

  21. Swarts C. G. et al. Proton transport and pH management in the kidney // Journal of the American Society of Nephrology. 2023. Vol. 34, № 10. P. 1625–1637.

  22. Ленинджер А. Л., Фингер В. М., Фингер Э. Биохимия / пер. с англ. — М.: Мир, 1988. — 480 с.
Записаться на занятия.
Made on
Tilda